多巴胺能系统深度解析
核心警示:对于管制类药物,本文将严格限定于讨论在其药理学机制的科学研究层面,并明确警示其潜在风险和法律地位。本文绝对不会提供任何形式的用药指导、剂量建议或获取途径。任何未经医生处方、非法获取或使用此类药品的行为均属违法,且对健康具有极大危害。
多巴胺能系统与脑认知
多巴胺 (Dopamine, DA) 作为中枢神经系统中的一种关键神经递质,在调控广泛的生理及心理过程中扮演着核心角色。其功能涉及学习与记忆、奖赏与动机、运动控制、情绪调节、执行功能(如注意力、规划和决策)等多个方面 。多巴胺通过作用于大脑内特定的神经通路,精细调控着我们的思想、情感和行为。
大脑内存在多条主要的多巴胺能通路,其中,中脑边缘通路 (mesolimbic pathway) 和中脑皮质通路 (mesocortical pathway) 对于认知功能、决策制定、动机驱动以及情绪状态的调节尤为关键 。
中脑边缘通路主要与奖赏、快感和动机相关,而中脑皮质通路则更多地参与高级认知功能,如工作记忆和执行控制。
鉴于多巴胺能系统在上述核心功能中的广泛参与,任何影响该系统的物质都可能对个体的认知和行为产生深远影响。多巴胺能系统的功能失调与多种神经及精神疾病的病理生理过程密切相关,这些疾病包括帕金森病 (Parkinson's disease)、精神分裂症 (schizophrenia)、注意力缺陷多动障碍 (Attention-Deficit/Hyperactivity Disorder, ADHD) 以及物质成瘾 (substance addiction) 。
多巴胺系统在奖赏和动机(主要通过中脑边缘通路)以及执行功能(主要通过中脑皮质通路)中的双重核心作用,使其成为认知增强药物和治疗相关精神障碍药物的重要靶点。
然而,也正是由于其复杂性和广泛性,针对多巴胺系统的干预措施往往可能带来多方面甚至是预料之外的效应。例如,增强多巴胺信号的药物虽可能改善注意力和驱动力(ADHD治疗的原理),但其对奖赏通路的激活也赋予了许多此类药物高度的成瘾潜力。
这种双重性是理解多巴胺能药物作用的关键。
多巴胺能系统的神经生物学基础
多巴胺能系统是中枢神经系统中最为复杂和重要的神经递质系统之一。其功能的正常运作对于维持个体的认知、情绪、动机和运动控制至关重要。深入理解多巴胺的生物化学过程、受体机制、神经通路以及信号调控模式,是揭示各类促智药物和补充剂作用原理的前提。
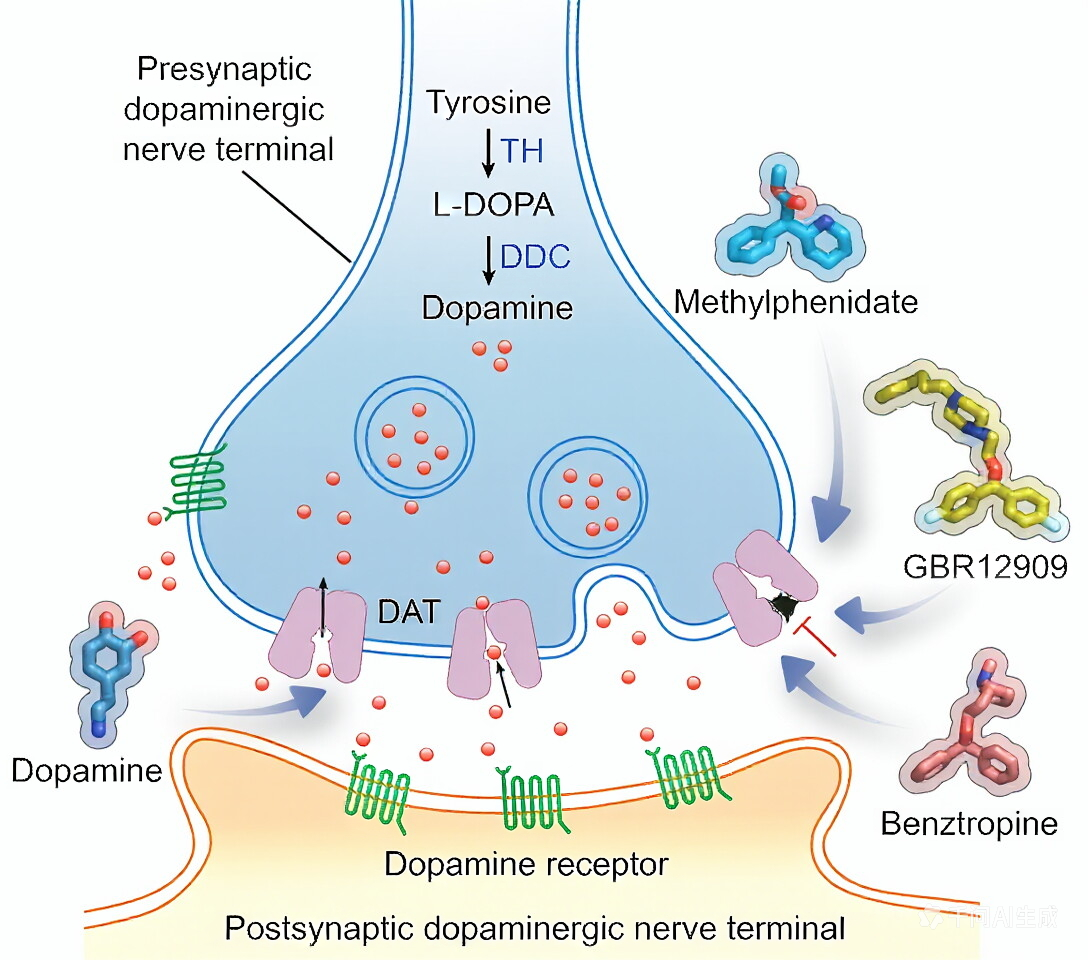
多巴胺的生物合成、储存、释放与代谢通路
多巴胺的生命周期涉及一系列精密调控的生化步骤,确保其在需要时能够准确、适量地发挥作用,并在作用完成后被有效清除,以维持神经信号的精确性。
● 合成 (Synthesis): 多巴胺的生物合成始于膳食中的氨基酸——酪氨酸 (Tyrosine)。在多巴胺能神经元内部,酪氨酸首先在酪氨酸羟化酶 (Tyrosine Hydroxylase, TH) 的催化下,转化为L-三,四-二羟苯丙氨酸 (L-DOPA)。TH是儿茶酚胺(包括多巴胺、去甲肾上腺素和肾上腺素)合成途径中的关键限速酶,其活性受到多种因素的调控,包括神经活动、底物浓度和磷酸化等。
随后,L-DOPA在多巴脱羧酶 (DOPA decarboxylase),也称为芳香族L-氨基酸脱羧酶 (Aromatic L-amino acid Decarboxylase, AADC) 的作用下,脱去羧基生成多巴胺。这一合成过程主要发生在多巴胺能神经元的细胞质中,尤其是在神经末梢区域。
L-酪氨酸作为多巴胺的直接前体,其供应情况理论上会影响多巴胺的合成速率。然而,由于TH是限速酶,单纯增加L-酪氨酸的摄入量并不一定能线性提高多巴胺的产量。
TH的活性、辅因子(如四氢生物蝶呤、铁离子、维生素B等)的充足性以及酶的磷酸化状态等,共同决定了多巴胺的实际合成效率。
这意味着,若TH饱和或辅因子缺乏,即使L-酪氨酸供应充足,多巴胺合成也可能受限。这一机制对于评估后续章节中L-酪氨酸等补充剂的潜在效果至关重要。
● 储存 (Storage): 新合成的多巴胺如果长时间游离于细胞质中,很容易被单胺氧化酶 (MAO) 等酶类降解。
为了保护多巴胺并为神经冲动依赖性的快速释放做好准备,细胞质中的多巴胺会被一种特殊的转运蛋白——囊泡单胺转运体 (Vesicular Monoamine Transporter , VMAT)——主动转运至突触囊泡内储存起来。
VMAT利用囊泡膜内外的质子梯度提供能量,将多巴胺浓缩于囊泡内。囊泡内的高浓度多巴胺使得一次神经冲动可以释放足够量的神经递质,以产生有效的突触后效应。VMAT的功能不仅保护多巴胺免遭降解,还决定了每个囊泡中多巴胺的含量(即量子大小),从而影响神经信号的强度。
● 释放 (Release): 当动作电位(神经冲动)传导至多巴胺能神经元的轴突末梢时,会引起突触前膜的去极化,激活电压依赖性钙离子 (Ca+) 通道。
Ca+ 的内流是触发神经递质释放的关键信号。Ca+ 浓度的升高促使储存多巴胺的突触囊泡向突触前膜的活性区域移动、停靠并最终与细胞膜融合,通过胞吐作用 (exocytosis) 将囊泡内的多巴胺释放到突触间隙中。
多巴胺的释放过程可以是快速的,在毫秒级别发生,这依赖于一种名为Synaptotagmin-的钙传感器蛋白。此外,也存在较慢的、持续时间更长的多巴胺释放形式。
● 再摄取 (Reuptake): 多巴胺在突触间隙中与突触后膜或突触前膜上的多巴胺受体结合,发挥其生理效应。为了精确控制神经信号的时间和强度,并回收利用神经递质,突触间隙中的多巴胺需要被及时清除。
这一过程主要由位于突触前多巴胺能神经元膜上的多巴胺转运体 (Dopamine Transporter, DAT) 完成。DAT利用钠离子 (Na+) 梯度将多巴胺从突触间隙主动转运回突触前神经元的胞浆内。
DAT的活性对维持多巴胺能系统的稳态至关重要,其功能异常或被药物抑制将显著改变突触间隙多巴胺的浓度和作用时间。
● 代谢 (Metabolism): 未被DAT再摄取回神经元的多巴胺,以及神经元内未储存于囊泡的多巴胺,会通过酶促反应被降解。
主要的代谢酶有两个:
○ 单胺氧化酶 (Monoamine Oxidase, MAO): 主要存在于神经元线粒体外膜,负责氧化分解胞浆中的多巴胺,生成,四-二羟基苯乙醛,后者进一步代谢为,四-二羟基苯乙酸 (DOPAC)。MAO有MAO-A和MAO-B两种亚型,均可代谢多巴胺。
○ 儿茶酚-O-甲基转移酶 (Catechol-O-Methyltransferase, COMT): 主要存在于神经元外,例如胶质细胞和肝脏中,负责将多巴胺(或DOPAC)甲基化,生成-甲氧酪胺 (MT) 或高香草酸 (Homovanillic Acid, HVA)。HVA是多巴胺在脑脊液和尿液中的主要最终代谢产物,常作为多巴胺周转率的指标。
VMAT和DAT是多巴胺信号传递过程中的两个关键调控点,也是多种精神兴奋剂(如苯丙胺、可卡因、哌甲酯)的主要作用靶点。
VMAT负责将多巴胺“打包”送入囊泡,影响释放时的“弹药量”;而DAT则负责“清扫战场”,终止多巴胺的突触作用。
这些转运体的功能异常或受到药物的药理学调节,会深刻地改变多巴胺的胞内和胞外浓度、储存量以及信号传递的强度与时效。例如,苯丙胺类药物不仅抑制DAT,还能够干扰VMAT的功能,导致囊泡内多巴胺泄漏至胞浆,并可能通过DAT发生逆向转运,将胞浆内多巴胺“泵出”到突触间隙。而哌甲酯和可卡因则主要通过阻断DAT的再摄取功能,延长多巴胺在突触间隙的停留时间。
理解这些转运蛋白的作用机制,对于阐释许多影响多巴胺能系统的药物(包括一些促智药)的药理效应及其潜在的成瘾性至关重要。
多巴胺的合成、储存、释放、再摄取和代谢共同构成了一个动态平衡的系统。机体通过多种反馈机制(如突触前自身受体对释放的调控、酶活性的调节等)来维持多巴胺信号的稳态。
长期的外源性药物干预,特别是那些强效影响多巴胺水平的物质,很容易打破这种稳态平衡,从而引发神经系统的适应性改变,这些改变是药物耐受、依赖乃至神经毒性发生的生理基础